ヒトの受精卵が分裂を重ね、細胞が八つになった頃、発生が止まってしまう胚がある。その原因を突き止めるのは容易ではない。ヒト胚を使った研究には提供者の同意と厳格な倫理審査が必要で、研究に利用できる胚にも限りがある。研究者たちは実際の胚を調べる一方、初期胚に特徴的な遺伝子の働きの一部を再現する、幹細胞由来の培養モデルも活用している。
2026年、Yangquan Xiangらの研究チームは『Science』誌で、発生が停止したヒト胚の解析から意外な手掛かりを得たと報告した。発生が続いた胚と比べると、8細胞期で発生が止まった胚では、遠い祖先が感染したウイルスに由来するDNA配列の発現が低かったのである。
ヒトのゲノムには、過去のレトロウイルス感染の痕跡が数多く残っている。その大半は、もはや完全なウイルスを作ることができない。こうした配列の多くは、長年、特に機能を持たない遺伝的な残骸と考えられてきた。ところが、研究チームが注目した「MLT2A1」というウイルス由来の反復配列は、ただ残っているだけではなかった。
MLT2A1から作られるRNAの量を減らすと、胚の発生に支障が生じ、多くの遺伝子の活性化も弱まった。RNAはDNAの情報をもとに作られる分子で、他の遺伝子の働きを調節するものもある。さらに調べると、ゲノムの各所に散在するMLT2A1配列がそれぞれ異なるRNAを作り、それらが協調して初期胚の遺伝子発現を強める仕組みが見えてきた。1
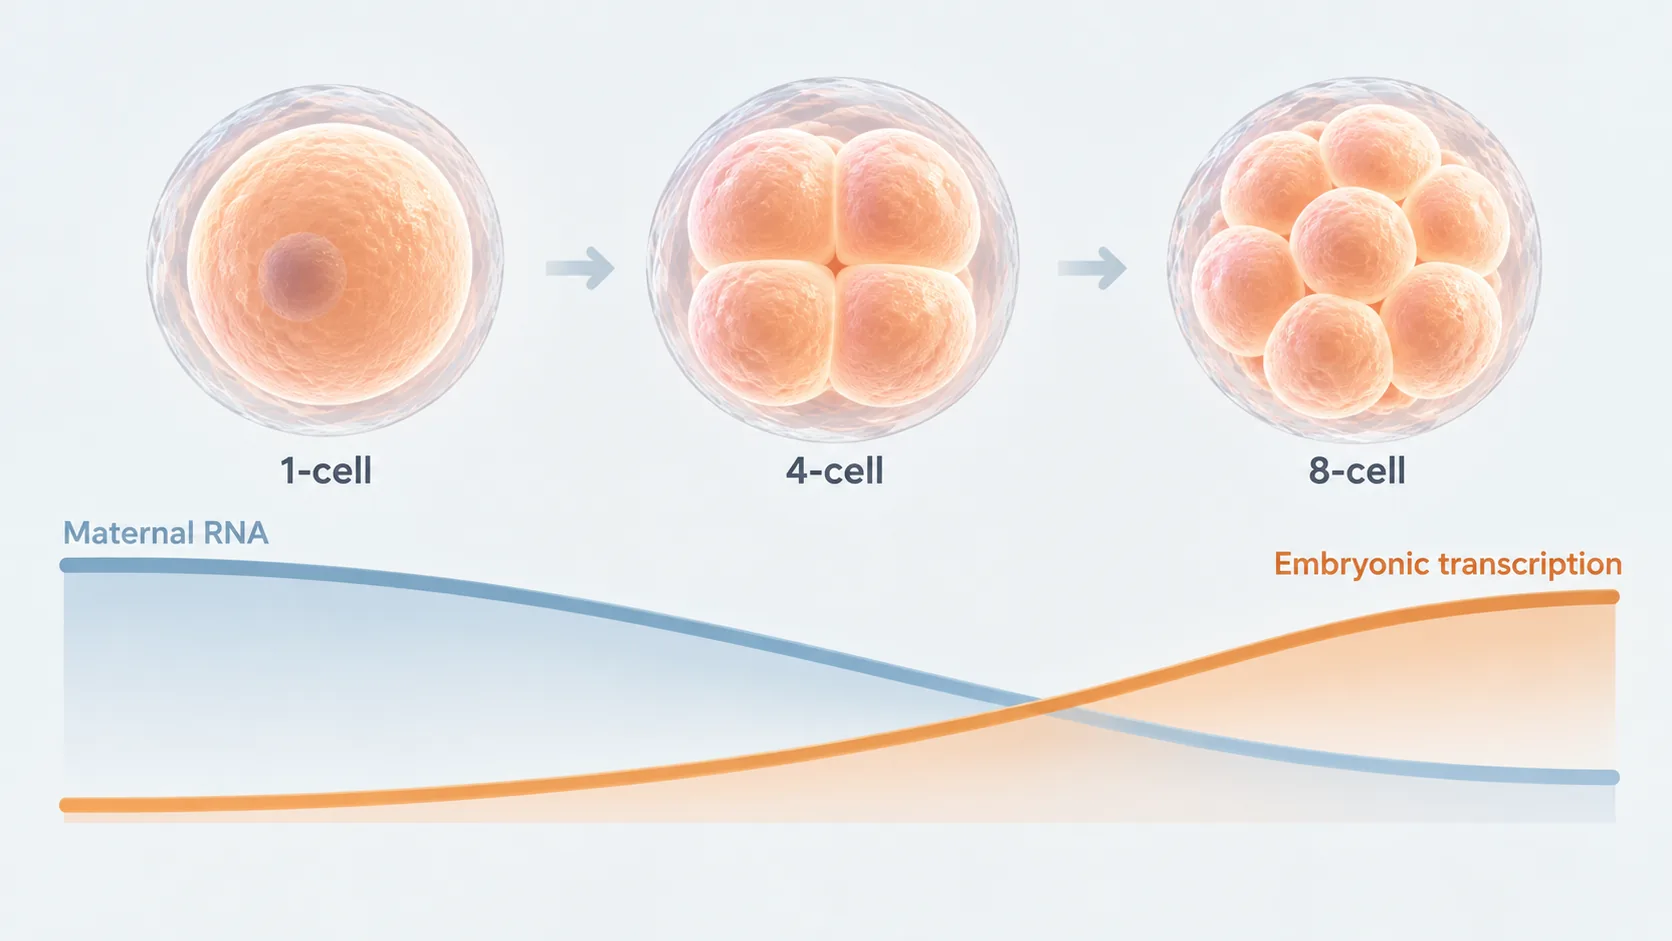
この発見が重要なのは、受精後間もない胚が遺伝子発現の大きな転換期を迎えるためだ。発生初期の胚は、卵子から受け継いだRNAやタンパク質に大きく依存する。やがて自分自身のDNAからRNAを作る働きが増え、ヒトでは8細胞期頃に大規模な遺伝子の活性化が起こる。これを**接合子ゲノム活性化(ZGA)**という。2
かつてウイルスの一部だったDNAが、ヒト胚自身のゲノムを本格的に動かす過程に関わっていたのだ。
ゲノムに残されたウイルスの痕跡
レトロウイルスは、感染した細胞のDNAに自らの遺伝情報を組み込む。遠い祖先の生殖細胞でこうした組み込みが起こり、それが子孫に受け継がれれば、ウイルス由来の配列も遺伝する。
長い年月の間に、その配列には変異が蓄積する。完全なウイルスを作る能力を失っても、DNAはゲノムに残り得る。このような遺伝性のウイルス由来配列は、**内在性レトロウイルス(ERV)**と呼ばれる。
ヒトがウイルス由来の遺伝物質を自らの機能に利用していることは、以前から知られていた。代表例は胎盤で働く**シンシチン(syncytin)**だ。レトロウイルスのエンベロープタンパク質に由来し、胎盤の細胞同士が融合する際に役立つ。3
初期のヒト胚でウイルス由来配列が盛んに発現することも、新しい発見ではない。ただし、ある配列の発現量が発生段階によって変わるという観察だけでは、その配列が発生に実際に役立っているかどうかは分からない。
だからこそ、MLT2A1由来RNAを減らす実験が重要だった。研究チームは、研究用のヒト胚と、8細胞期の遺伝子発現の特徴を一部再現した培養細胞モデルを使って、MLT2A1の機能を調べた。RNAを減らすと、複数の遺伝子の活性化が弱まり、試験した条件では胚の発生にも支障が生じた。14
MLT2A1は、発生が止まった胚でたまたま発現が低かった目印にとどまらない。初期胚のゲノム活性化を助ける機能が、実験によって裏付けられた。
しかも、その働きは単一の遺伝子だけでは説明できなかった。
散在する配列がつくる調節ネットワーク
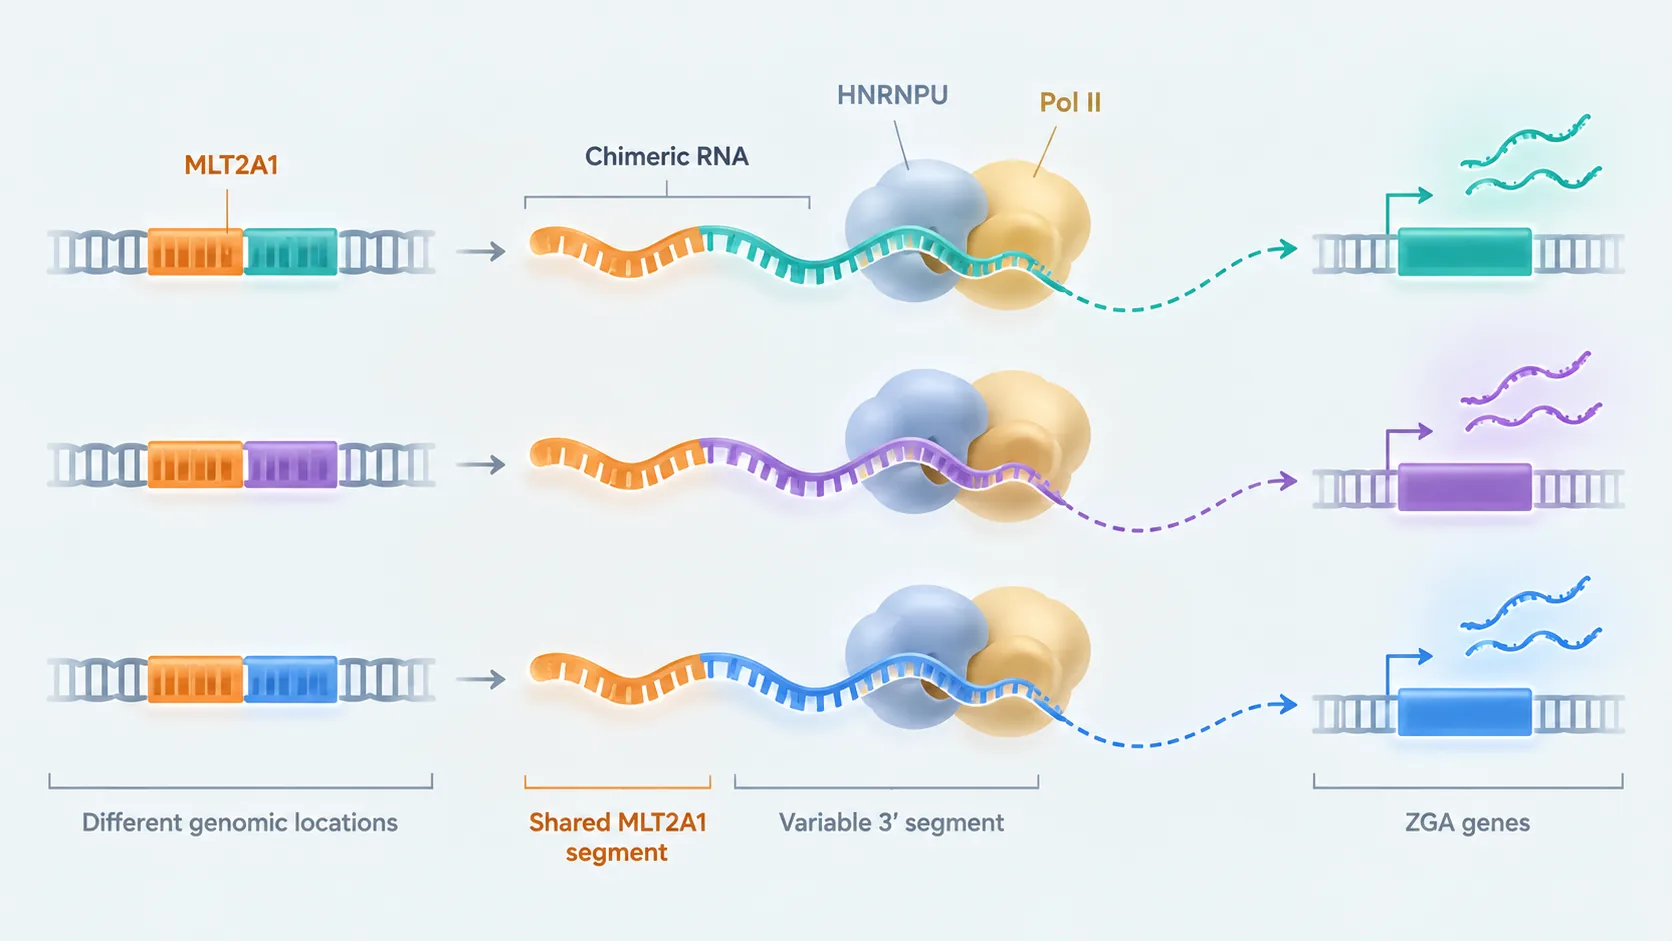
MLT2A1と呼ばれる配列群は、ゲノムのさまざまな場所に存在する。その隣に続くDNA配列は、場所ごとに異なる。
研究チームがそこで作られるRNAを調べると、MLT2A1部分で終わらず、隣接する配列まで続くRNAが数多く見つかった。
つまり、前半は似ていても後半は異なるRNAができていた。異なる配列に由来する部分がつながったRNAは、キメラRNAと呼ばれる。
この構造は働き方にも関係していた。RNAごとに異なる後半部分は、それぞれが作用し得るゲノム領域を広げていた。一方、共通するMLT2A1由来部分は、RNA結合タンパク質のHNRNPUと相互作用していた。HNRNPUは、DNAの情報をRNAへ写し取る酵素、RNAポリメラーゼIIを呼び込むことに関わっていた。1
異なる部分が作用する範囲を広げ、共通する部分が転写に必要な仕組みを集める。
これらのRNAは、初期胚の複数の遺伝子だけでなく、MLT2A1配列群そのものの発現も強めていた。ゲノム上の異なる場所から作られたRNAが協調し、より広い範囲の遺伝子活性化を支える仕組みだった。
この研究の新しさはそこにある。ウイルス由来の配列が新しい機能を得たというだけではない。ゲノム上に散らばった配列と、そこから生まれるRNAが、つながった一つの調節ネットワークとして働く仕組みを示したのである。
その働きは何によって、いつ始まるのか
では、MLT2A1の発現は何をきっかけに始まるのだろう。
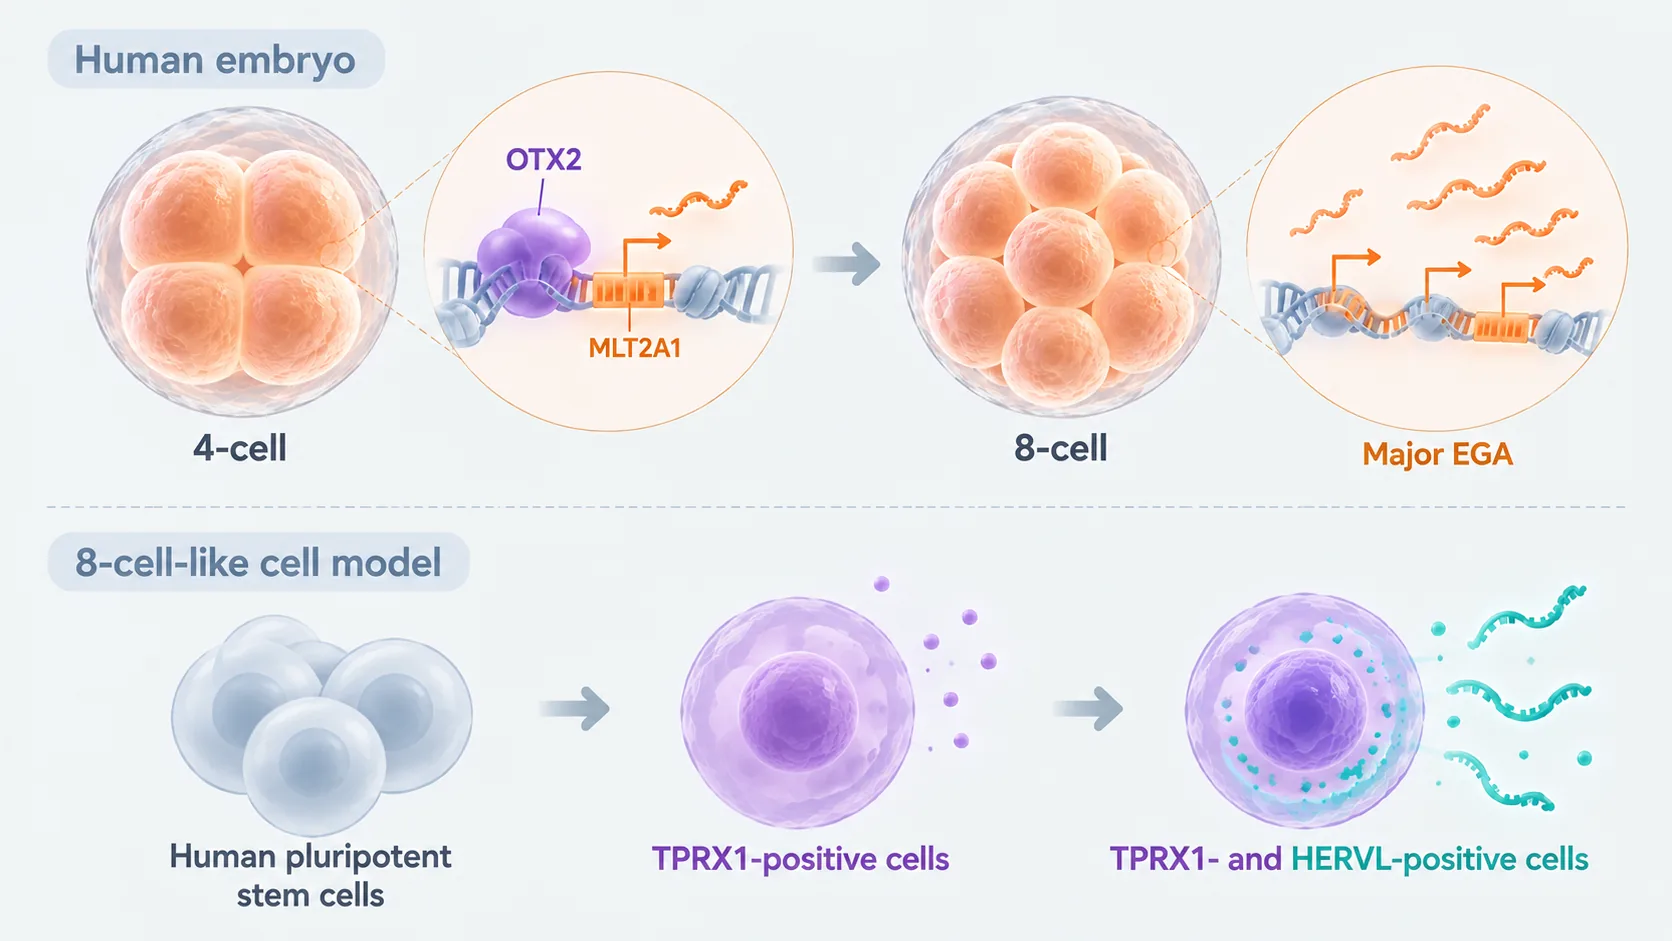
2025年の『Nature Genetics』誌で、Qiuyan Wangらは、卵子から胚へ引き継がれる転写因子OTX2がヒトの初期ゲノム活性化に関わることを報告した。転写因子とは、DNAの特定の領域に結合し、遺伝子の働きを調節するタンパク質だ。
OTX2は4細胞期から、ほかの遺伝子や反復配列とともにMLT2A1の活性化を促した。初期胚の遺伝子発現は、MLT2A1だけで独立に始まるわけではなく、卵子から引き継がれた調節因子などとの連携によって成り立っている。5
ここから、もう一つの疑問が生まれる。どの要素が働くかだけでなく、何が先に働き、何が後に続くかも、発生を理解するうえで重要なのではないか。
2026年10月に『Cell Reports』誌に掲載された研究で、An Huangらは、これに関連する活性化の順序を追った。ただし、調べたのは実際のヒト胚ではない。ヒト幹細胞を培養し、初期胚に似た遺伝子発現の一部を示すようにした**8細胞期様細胞(8CLC)**である。
こうした細胞が形成される過程では、遺伝子の働きを調節する因子TPRX1の発現が先に現れた。その後、ウイルス由来の反復配列群HERVLも発現する細胞が現れた。HERVLの働きを抑えると、初期胚に似た細胞状態へ移行する過程にも影響が出た。6
これは、ヒト胚でMLT2A1の仕組みを再検証した研究ではない。それでも、培養モデルの中ではウイルス由来配列の発現に一定の順序があり、細胞状態の変化にも機能的に関わることを示している。
近年は、こうした細胞モデルをより効率よく作る方法も開発された。実際のヒト胚を繰り返し操作せずに、遺伝子活性化の順序や調節関係を調べる手段が増えつつある。7
発生が止まった胚では、何が起きていたのか
これらの研究成果が、直ちに不妊治療や体外受精の改善に使えるわけではない。
発生が止まった胚でMLT2A1の発現が低かったという観察と、RNAを人為的に減らしたところ発生に支障が出たという実験結果は、区別して考える必要がある。発生停止胚の解析には前核の状態が異なる試料が含まれ、一部の操作実験では、通常の受精胚とは異なり前核が三つ確認される3PN研究用胚が使われた。また、8CLCで得た結果は、実際の胚が発生を続けられるかどうかを直接示すものではない。4
同じ発生段階で停止した胚でも、内部で起きた分子レベルの変化が同じとは限らない。ある胚では遺伝子発現を始める調節因子に問題があり、別の胚では複数のRNAが協調する仕組みに異常があるかもしれない。
ただし、そうした違いが本当に発生停止に関わるかどうかは、まだ分かっていない。今回明らかになったのはMLT2A1由来RNAの機能であって、発生停止胚を原因別に分類する方法ではない。
同じ「発生停止」という結果の背後に異なる原因があるのか。その可能性を調べるための手掛かりが一つ得られた。
次の記事もお楽しみください
CAUSIFOLDの新しい記事やお知らせをSubstackでご覧いただけます。
Substackで購読する ↗注
1. 2026年の中心研究。 Xiang, Y. et al., “Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development,” Science 391, eadv5257 (2026). DOI: 10.1126/science.adv5257。Yangquan Xiangは共同筆頭著者の一人。研究チームは8細胞期で発生が止まったヒト胚でMLT2A1の発現低下を観察し、機能抑制実験と分子解析から、キメラRNA、HNRNPU、RNAポリメラーゼIIが関与する転写ネットワークを提示した。発現低下の観察と機能操作の結果は、異なる種類の証拠である。MLT2A1はERVL系統に関連する**長末端反復配列(LTR)**に属する。研究データはNCBI BioProject PRJNA1116059およびGEO GSE268270に登録されている。
2. 接合子ゲノム活性化。 受精直後のヒト胚は、卵子から受け継いだRNAやタンパク質に大きく依存する。その後、胚自身のゲノムからの転写が増え、8細胞期頃に大規模な活性化が目立つ。すべての遺伝子が一度にオンになるわけではない。 Xiang et al., Science (2026)
3. ウイルス由来配列の先行研究。 Mi, S. et al., “Syncytin is a captive retroviral envelope protein involved in human placental morphogenesis,” Nature 403, 785–789 (2000). DOI: 10.1038/35001608。Göke, J. et al., “Dynamic transcription of distinct classes of endogenous retroviral elements marks specific populations of early human embryonic cells,” Cell Stem Cell 16, 135–141 (2015). DOI: 10.1016/j.stem.2015.01.005。ウイルス由来の遺伝物質を生体が機能に利用することや、初期ヒト胚で反復配列が発生段階に応じて発現することは、2026年以前から知られていた。ただし、発現の観察だけで発生上の機能が必要不可欠だと証明されるわけではない。
4. 研究倫理と実験系の区別。 ヒト胚研究における提供者の同意や倫理的監督については、国際幹細胞学会(ISSCR)の幹細胞研究と臨床応用に関するガイドラインを参照。2025年の改訂では、幹細胞を用いた胚モデルの監督についても扱われた。ただし、8CLCのように特定の遺伝子発現を再現した細胞モデルを、完全なヒト胚と同一視してはならない。
Xiangらは実際のヒト胚と8細胞期様細胞を用いた。発生停止胚のトランスクリプトームデータであるGEO GSE268186には、2PN・3PN・0PNに分類された試料が含まれる。2PNは前核が二つ、3PNは三つ観察された状態を、0PNは観察時に前核が確認されなかった状態を指す。正常な2PN胚との比較には、過去に公開されたトランスクリプトームデータ(SRP163205)を再解析して使用した。MLT2A1を抑制した後の遺伝子発現解析はGSE268184に登録されている。HNRNPUを抑制したGSE301882では、3PN研究用胚にsiRNAを注入した。受精、培養、操作条件の異なる実験を、すべて通常の受精胚の発生と同じものとして解釈することはできない。8CLCの実験的な位置づけについては、Taubenschmid-Stowers, J. et al., “8C-like cells capture the human zygotic genome activation program in vitro,” Cell Stem Cell 29, 449–459.e6 (2022), DOI: 10.1016/j.stem.2022.01.014を参照。
5. 宿主側の調節因子OTX2。 Wang, Q. et al., “Maternal factor OTX2 regulates human embryonic genome activation and early development,” Nature Genetics 57, 2772–2784 (2025). DOI: 10.1038/s41588-025-02350-8。Qiuyan Wangは共同筆頭著者。4細胞期のヒト胚で、OTX2はTPRX1・TPRX2、HERVL-int・MLT2A1の活性化を促した。OTX2とTPRXLを同時に抑制すると、8細胞期の遺伝子活性化とクロマチンのアクセシビリティに生じる異常がさらに大きくなった。この結果はOTX2の調節機能を支持するが、実際のヒト胚でTPRX1がMLT2A1を直接活性化すると証明したものではない。
6. 8細胞期様細胞における活性化の順序。 Huang, A. et al., “Sequential TPRX1 and HERVL activation delineates a progression toward the totipotent-like state,” Cell Reports 45, 118163 (2026). DOI: 10.1016/j.celrep.2026.118163。An Huangらは異なる蛍光シグナルによってTPRX1とHERVLの活性を区別し、時間とともに変わる細胞状態を追跡した。CRISPR干渉とRNAを標的とする操作実験は、HERVL配列とその由来RNAが、この状態変化に機能的に寄与することを支持する。対象は培養細胞モデルであり、個々のHERVL座位の作用機構は未解明である。
7. 細胞モデルの新しい誘導法。 Kong, X. et al., “Chemical reprogramming of human pluripotent stem cells into 8-cell-like states,” Cell Research (2026). DOI: 10.1038/s41422-026-01314-9。Xi Kongらは7種類の化合物とLIFを組み合わせた「7CL」条件を使い、約6日間で8細胞期様細胞を誘導した。報告されたTPRX1陽性細胞の割合は約51.5%であり、ヒト胚の作製率や正常な発生の成功率を示すものではない。細胞モデルの作製・検証手法が進んだ事例として位置づけられる。