Al llegar a la fase de ocho células, algunos embriones humanos dejan de desarrollarse. Averiguar por qué no es sencillo. Las investigaciones con embriones humanos requieren el consentimiento de quienes los donan y una evaluación ética rigurosa. Además, el material disponible es limitado. Por eso, los científicos estudian embriones reales y también recurren a modelos celulares derivados de células madre que reproducen parte de la actividad genética de las primeras etapas del desarrollo.
En 2026, Yangquan Xiang y sus colaboradores publicaron en Science una pista inesperada. Al estudiar embriones humanos cuyo desarrollo se había detenido, observaron que, en los que se habían bloqueado en la fase de ocho células, la actividad de determinadas secuencias de ADN heredadas de antiguas infecciones víricas era menor que en los embriones cuyo desarrollo había continuado.
El genoma humano conserva numerosas huellas de infecciones por retrovirus sufridas por nuestros antepasados. La mayoría de esas secuencias ya no puede producir un virus completo, y durante mucho tiempo muchas se consideraron restos genéticos sin una función relevante. Sin embargo, unas secuencias repetitivas de origen vírico llamadas MLT2A1 resultaron ser algo más que vestigios inactivos.
Cuando los investigadores redujeron la cantidad de ARN producido a partir de MLT2A1, se alteró el desarrollo embrionario y disminuyó la activación de numerosos genes. El ARN se produce utilizando el ADN como molde; algunas de sus moléculas también regulan la actividad de otros genes. Un análisis más detallado reveló que las copias de MLT2A1 dispersas por el genoma generan ARN distintos que actúan conjuntamente para reforzar la actividad genética en el embrión temprano.1
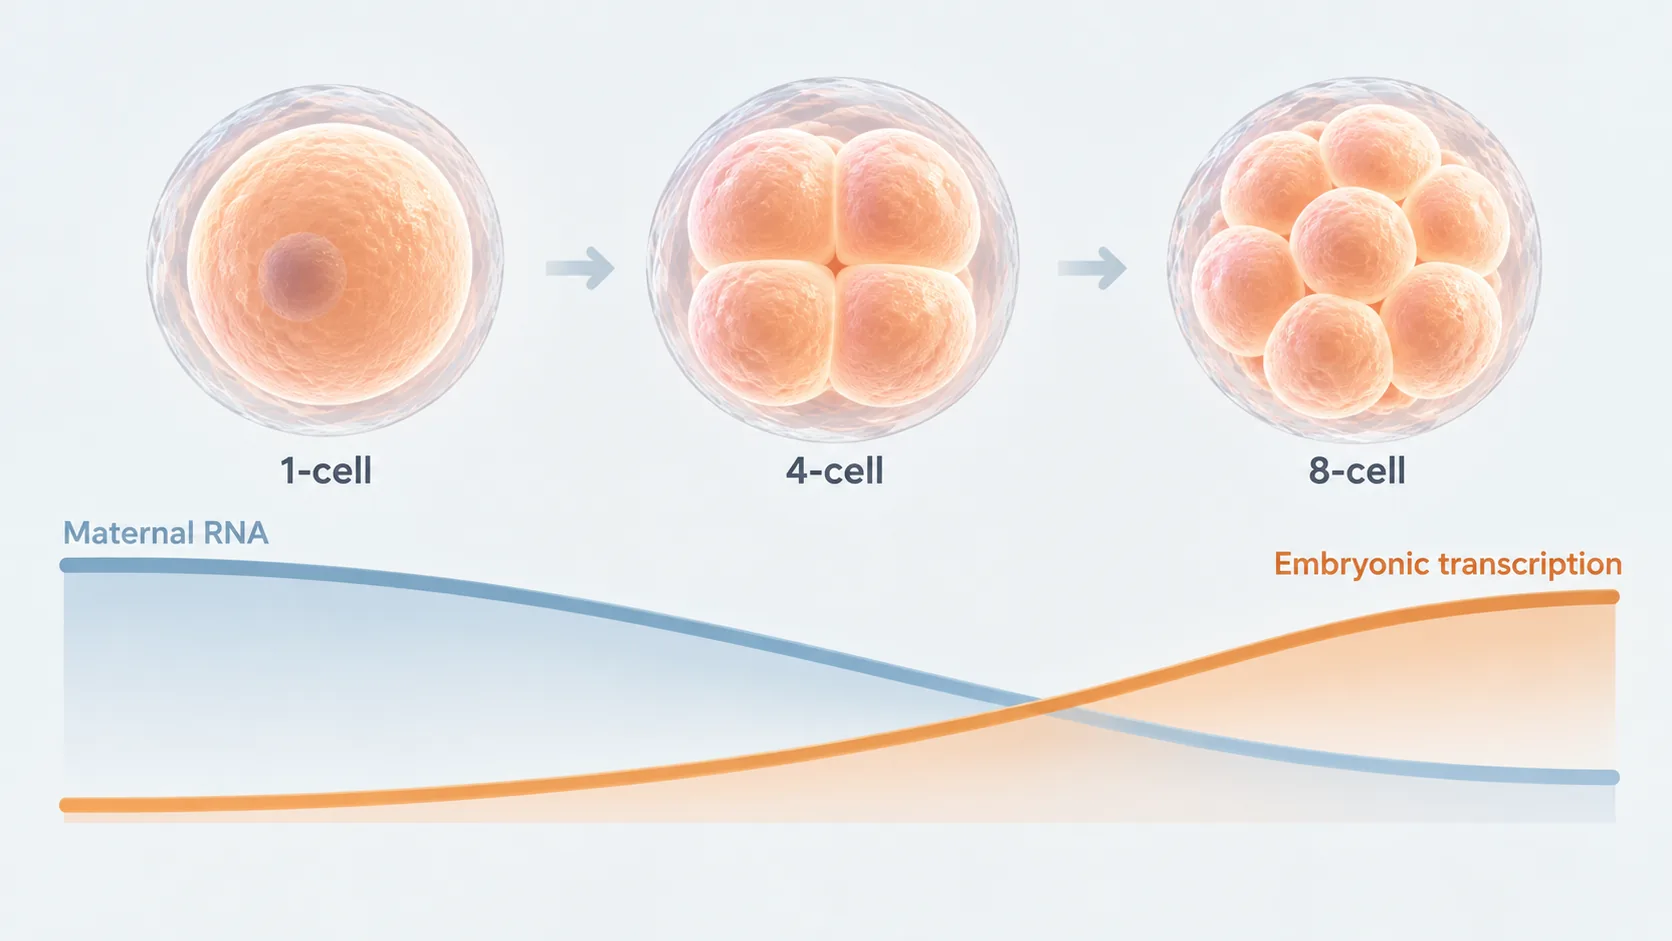
El hallazgo importa porque, poco después de la fecundación, el embrión atraviesa una transición decisiva. Al principio depende en gran medida del ARN y las proteínas que le aporta el óvulo. Después aumenta progresivamente la transcripción de su propio ADN. En el ser humano, una gran oleada de activación génica se produce alrededor de la fase de ocho células. Este proceso se denomina activación del genoma cigótico (ZGA).2
Unas secuencias de ADN procedentes de antiguos virus participaban en la puesta en marcha del propio genoma del embrión humano.
Huellas de virus en el genoma
Los retrovirus insertan su información genética en el ADN de las células que infectan. Si una inserción ocurrió en una célula germinal de un antepasado remoto y se transmitió a sus descendientes, ese ADN de origen vírico pudo pasar a formar parte del genoma heredado.
Con el tiempo, estas secuencias acumulan mutaciones. Aunque pierdan la capacidad de producir un virus completo, pueden permanecer en el genoma. Se conocen como retrovirus endógenos (ERV).
Hace tiempo que se sabe que el organismo humano puede aprovechar material genético procedente de virus. Un ejemplo es la sincitina (syncytin), una proteína derivada de la envoltura de un retrovirus que interviene en la fusión de células de la placenta.3
Tampoco es nuevo que algunas secuencias de origen vírico se expresen intensamente en embriones humanos tempranos. Pero observar que una secuencia aumenta o disminuye su expresión en determinada etapa no basta para saber si desempeña una función en el desarrollo.
De ahí la importancia de los experimentos en los que se redujo el ARN derivado de MLT2A1. El equipo examinó su función tanto en embriones humanos utilizados para investigación como en un modelo de células cultivadas que reproduce parte del programa de transcripción propio de la fase de ocho células. Al reducir ese ARN, se debilitó la activación de varios genes y, en las condiciones ensayadas, también se alteró el desarrollo embrionario.14
MLT2A1 no era, por tanto, un simple marcador cuya actividad resultaba menor en los embriones detenidos. Los experimentos respaldaron su función en la activación del genoma durante las primeras etapas del desarrollo.
Esa función, sin embargo, no podía explicarse por la actividad de un único gen.
Secuencias dispersas, una red de regulación
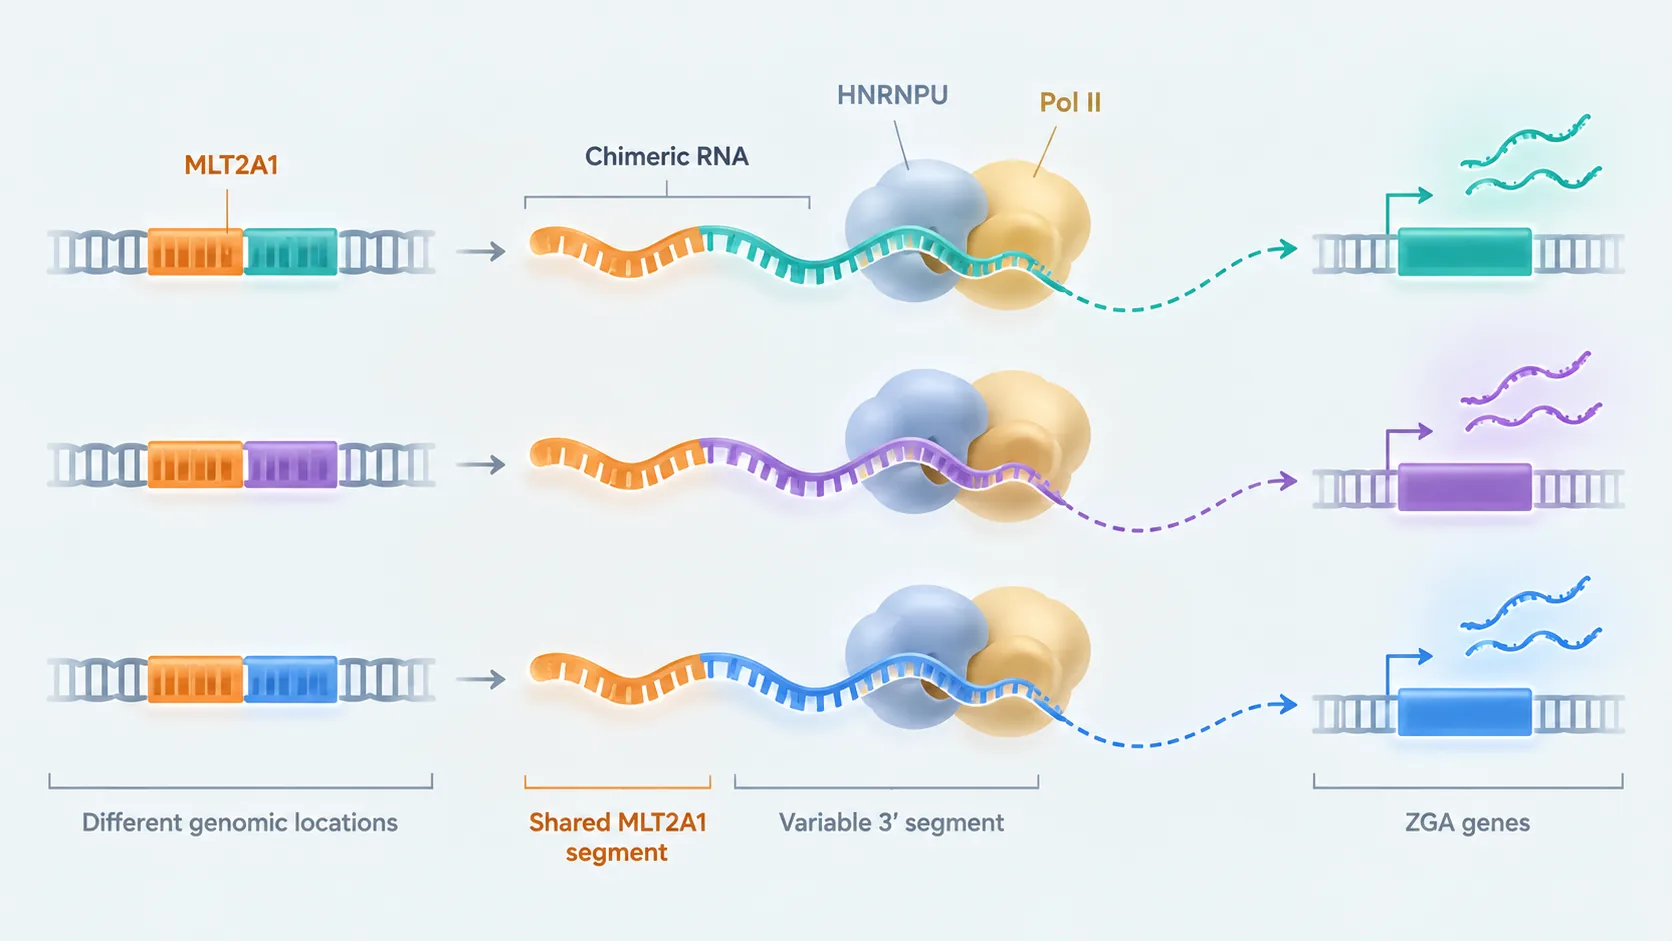
Las secuencias de la familia MLT2A1 están repartidas por diferentes lugares del genoma. El tramo de ADN que sigue a cada una varía según su ubicación.
Al examinar el ARN producido en esos lugares, el equipo descubrió que muchas moléculas no terminaban al final de MLT2A1: la transcripción continuaba hacia las secuencias vecinas.
Así se generaban moléculas de ARN cuyo comienzo era parecido, pero cuyo tramo final difería. Se denomina ARN quimérico al que reúne fragmentos procedentes de distintas secuencias.
La estructura también tenía consecuencias funcionales. Los tramos finales variables ampliaban la diversidad de regiones del genoma sobre las que esos ARN podían actuar. En cambio, la región común derivada de MLT2A1 interactuaba con HNRNPU, una proteína que se une al ARN. HNRNPU contribuía a reclutar la ARN polimerasa II, la enzima que transcribe el ADN para producir ARN.1
Los segmentos diferentes ampliaban el alcance de la red; el segmento compartido ayudaba a reunir la maquinaria necesaria para transcribir genes.
Estas moléculas reforzaban la expresión de varios genes embrionarios y también la de la propia familia MLT2A1. Los ARN generados en distintas zonas del genoma colaboraban así en un programa más amplio de activación génica.
Ahí reside la novedad del estudio. No se limita a mostrar que una antigua secuencia vírica adquirió una función útil. Describe cómo secuencias dispersas por el genoma y los ARN que producen pueden actuar como una red de regulación interconectada.
¿Qué inicia esa actividad y en qué momento?
¿Cómo empieza a expresarse MLT2A1?
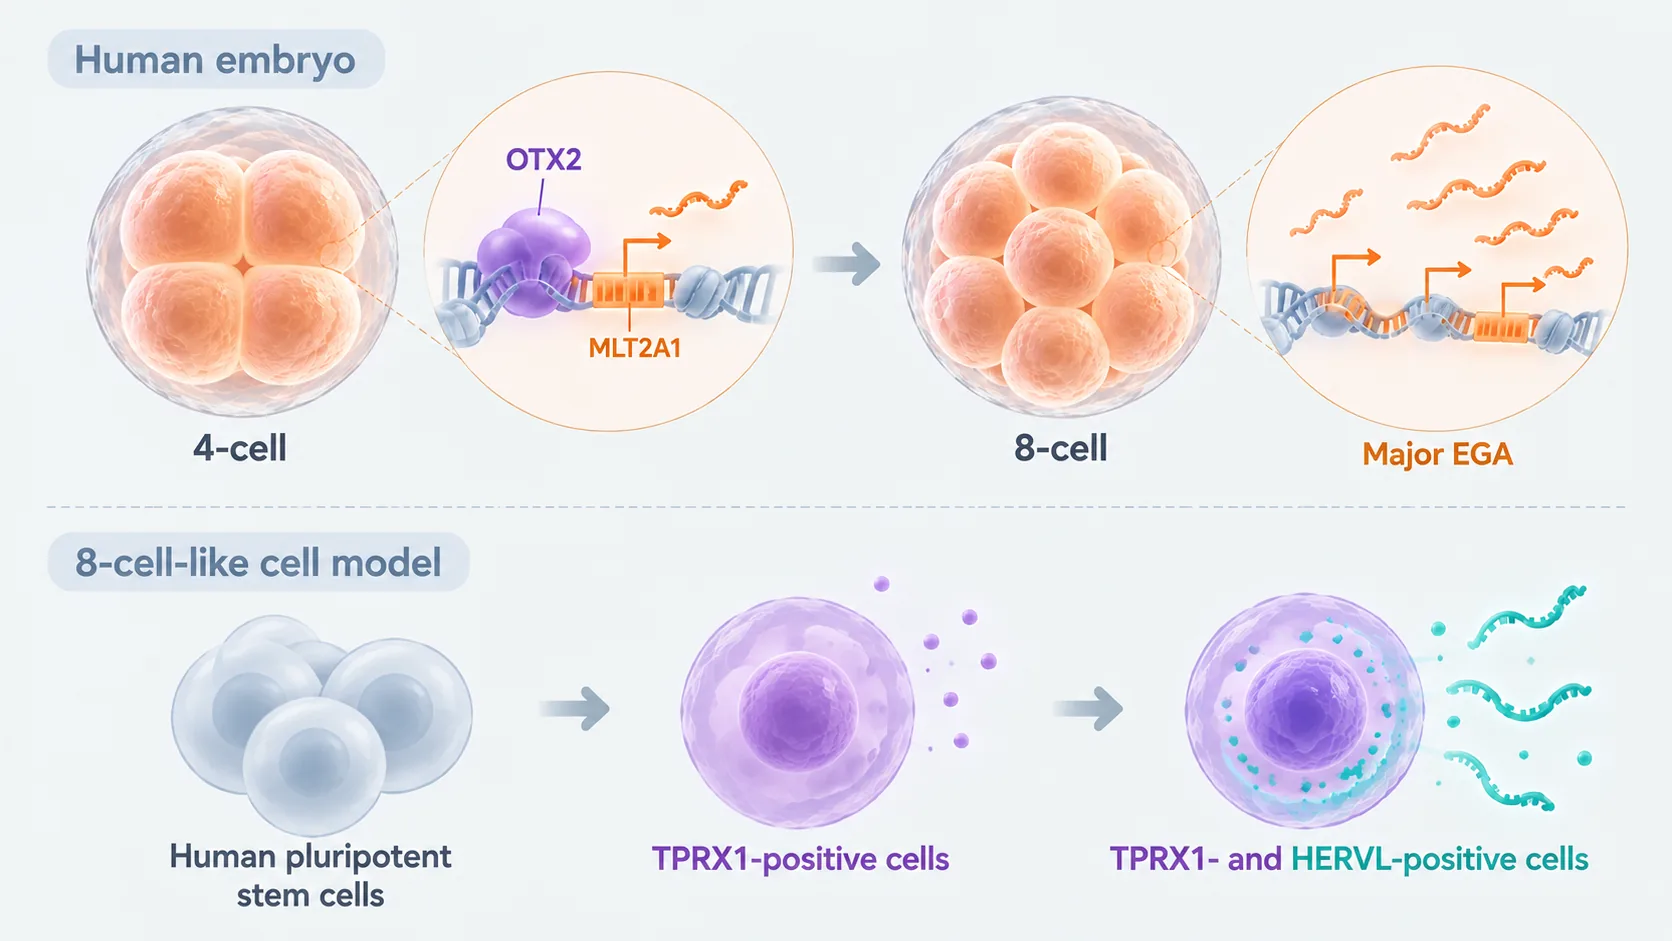
En un estudio publicado en Nature Genetics en 2025, Qiuyan Wang y sus colaboradores demostraron que OTX2, un factor de transcripción transmitido del óvulo al embrión, participa en la activación temprana del genoma humano. Los factores de transcripción son proteínas que se unen a determinadas regiones del ADN y regulan la actividad de los genes.
Desde la fase de cuatro células, OTX2 favoreció la activación de MLT2A1 y de otros genes y secuencias repetitivas. La transcripción temprana del embrión, por tanto, no comienza por la acción aislada de MLT2A1, sino en coordinación con factores reguladores heredados del óvulo y otros componentes del sistema de regulación.5
Esto plantea otra cuestión: para entender el desarrollo, quizá importe tanto saber qué elementos participan en la activación génica como cuáles se activan primero y cuáles aparecen después.
En octubre de 2026, An Huang y sus colaboradores publicaron en Cell Reports un estudio sobre una secuencia de acontecimientos relacionada con este proceso. No trabajaron con embriones humanos reales, sino con células similares a las de un embrión de ocho células (8CLC), obtenidas mediante el cultivo de células madre humanas. Estos modelos reproducen algunas características de la expresión génica de los embriones tempranos.
Durante la formación de ese estado celular apareció primero la expresión de TPRX1, un regulador de la actividad génica. Más tarde surgieron células en las que también se expresaba HERVL, una familia de secuencias repetitivas de origen vírico. La supresión de HERVL afectó además a la transición hacia ese estado semejante al del embrión temprano.6
El estudio no volvió a comprobar el mecanismo de MLT2A1 en embriones humanos. Sí mostró, en cambio, que la activación de secuencias de origen vírico sigue una determinada secuencia temporal en este modelo y que su actividad contribuye a los cambios de estado celular.
También se han desarrollado métodos más eficientes para obtener estos modelos. Las células cultivadas ofrecen nuevas posibilidades para estudiar el orden de los acontecimientos y las relaciones de regulación sin tener que manipular repetidamente embriones humanos reales.7
¿Qué falló en los embriones cuyo desarrollo se detuvo?
Estos resultados no se traducen todavía en un tratamiento inmediato para la infertilidad ni en una solución clínica para la fecundación in vitro.
Observar una menor expresión de MLT2A1 en embriones detenidos no equivale a demostrar, mediante una intervención, que reducir su ARN altera el desarrollo. Los datos sobre embriones detenidos incluyen muestras con distintas clasificaciones pronucleares. En algunos experimentos se utilizaron embriones de investigación con tres pronúcleos (3PN), diferentes de los embriones fecundados normalmente. Tampoco los resultados obtenidos en células similares a las de ocho células permiten determinar directamente si un embrión real podrá seguir desarrollándose.4
Que dos embriones se detengan en la misma etapa no significa que hayan sufrido los mismos cambios moleculares. En uno podría haber fallado un regulador que inicia la expresión génica; en otro, las interacciones entre distintos ARN.
Todavía no se ha establecido si alguna de esas alteraciones causa realmente la detención del desarrollo. El estudio identificó una función de los ARN derivados de MLT2A1, pero no un método para clasificar los embriones detenidos según su causa.
Ahora existe una pista molecular para investigar si un mismo desenlace —la detención del desarrollo— puede tener causas diferentes.
Siga leyendo CAUSIFOLD
Siga los nuevos artículos y novedades de CAUSIFOLD en Substack.
Suscribirse en Substack ↗Notas
1. Estudio principal de 2026. Xiang, Y. et al., “Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development,” Science 391, eadv5257 (2026). DOI: 10.1126/science.adv5257. Yangquan Xiang figura entre los autores que comparten la primera autoría. El equipo observó una menor expresión de MLT2A1 en embriones humanos detenidos en la fase de ocho células. Los experimentos de inhibición y los análisis moleculares respaldaron una red de transcripción en la que participan ARN quiméricos, HNRNPU y la ARN polimerasa II. Los datos observacionales y los obtenidos mediante intervenciones experimentales son pruebas de distinto tipo. MLT2A1 pertenece a una familia de repeticiones terminales largas (LTR) asociadas a ERVL. Los datos se depositaron en NCBI BioProject PRJNA1116059 y GEO GSE268270.
2. Activación del genoma cigótico. Tras la fecundación, el embrión humano depende en gran medida del ARN y las proteínas aportados por el óvulo. La transcripción de su propio genoma aumenta de forma gradual, con una fase de activación importante alrededor de las ocho células. No se trata de un único instante en el que todos los genes se encienden a la vez. Xiang et al., Science (2026)
3. Estudios anteriores sobre secuencias de origen vírico. Mi, S. et al., “Syncytin is a captive retroviral envelope protein involved in human placental morphogenesis,” Nature 403, 785–789 (2000). DOI: 10.1038/35001608. Göke, J. et al., “Dynamic transcription of distinct classes of endogenous retroviral elements marks specific populations of early human embryonic cells,” Cell Stem Cell 16, 135–141 (2015). DOI: 10.1016/j.stem.2015.01.005. Antes de 2026 ya se había investigado tanto el aprovechamiento funcional de material genético de origen vírico como la expresión de secuencias repetitivas en distintas etapas del embrión humano. Sin embargo, detectar expresión no demuestra por sí solo que exista una función indispensable para el desarrollo.
4. Ética y diferencias entre sistemas experimentales. Las orientaciones internacionales sobre consentimiento y supervisión ética de la investigación con embriones humanos se recogen en las Guidelines for Stem Cell Research and Clinical Translation de la Sociedad Internacional para la Investigación con Células Madre (ISSCR). La actualización de 2025 también abordó la supervisión de los modelos embrionarios derivados de células madre. Un modelo como las 8CLC, que reproduce aspectos concretos de la expresión génica, no debe equipararse a un embrión humano completo.
Xiang y sus colaboradores utilizaron embriones humanos reales y células similares a las de ocho células. El conjunto de transcriptomas de embriones detenidos, GEO GSE268186, incluye muestras clasificadas como 2PN, 3PN y 0PN. Las siglas indican dos, tres o ningún pronúcleo observado en el momento del examen, respectivamente; 0PN no demuestra por sí solo la ausencia de fecundación. Para la comparación con embriones 2PN normales también se reprocesaron datos transcriptómicos previamente publicados (SRP163205). Los datos de expresión tras reducir MLT2A1 se registraron en GSE268184. En el experimento de inhibición de HNRNPU GSE301882 se inyectó siRNA en embriones de investigación 3PN. Los resultados obtenidos bajo distintas condiciones de fecundación, cultivo o manipulación no pueden interpretarse todos como si procedieran de embriones fecundados normalmente. Sobre la naturaleza experimental de las 8CLC, véase Taubenschmid-Stowers, J. et al., “8C-like cells capture the human zygotic genome activation program in vitro,” Cell Stem Cell 29, 449–459.e6 (2022), DOI: 10.1016/j.stem.2022.01.014.
5. El factor regulador OTX2, de origen materno. Wang, Q. et al., “Maternal factor OTX2 regulates human embryonic genome activation and early development,” Nature Genetics 57, 2772–2784 (2025). DOI: 10.1038/s41588-025-02350-8. Qiuyan Wang comparte la primera autoría. En embriones humanos de cuatro células, OTX2 favoreció la activación de TPRX1, TPRX2, HERVL-int y MLT2A1. La inhibición conjunta de OTX2 y TPRXL acentuó los defectos de activación génica y accesibilidad de la cromatina en la fase de ocho células. Los resultados respaldan una función reguladora de OTX2, pero no demuestran que TPRX1 active directamente MLT2A1 en embriones humanos reales.
6. Orden de activación en células similares a las de ocho células. Huang, A. et al., “Sequential TPRX1 and HERVL activation delineates a progression toward the totipotent-like state,” Cell Reports 45, 118163 (2026). DOI: 10.1016/j.celrep.2026.118163. An Huang y sus colaboradores usaron distintas señales fluorescentes para distinguir la actividad de TPRX1 y HERVL y seguir la evolución del estado celular. Los experimentos de interferencia CRISPR y las intervenciones dirigidas contra ARN respaldan la contribución funcional de secuencias HERVL y de sus ARN en esa transición. Los ensayos se realizaron en modelos de células cultivadas; aún no se conoce el mecanismo de cada locus HERVL.
7. Una nueva vía para obtener el modelo celular. Kong, X. et al., “Chemical reprogramming of human pluripotent stem cells into 8-cell-like states,” Cell Research (2026). DOI: 10.1038/s41422-026-01314-9. Xi Kong y sus colaboradores utilizaron siete compuestos químicos y LIF en la condición denominada 7CL para inducir células similares a las de ocho células en unos seis días. La proporción notificada de células positivas para TPRX1 fue de aproximadamente el 51,5 %. No representa una tasa de creación de embriones humanos ni de desarrollo normal satisfactorio. El trabajo constituye un avance en la obtención y caracterización del modelo celular.