人类胚胎发育到八细胞阶段时,有些胚胎会停止继续发育。要查明原因并不容易。使用人类胚胎开展研究,需要取得捐赠者的知情同意并经过严格的伦理审查,可供研究的胚胎数量也很有限。因此,科学家一方面分析真实的人类胚胎,另一方面也使用干细胞培养模型,重现早期胚胎的部分基因活动。
2026年,Yangquan Xiang等研究人员在《Science》发表了一项研究。他们分析发育停滞的人类胚胎时,发现了一个意外线索:与继续发育的胚胎相比,停滞在八细胞阶段的胚胎中,某些由远古病毒感染遗留下来的DNA序列,表达水平更低。
人类基因组中保留着许多古老逆转录病毒感染的痕迹。其中大多数序列早已无法产生完整病毒,长期以来,不少这类序列被视为几乎没有功能的遗传残余。但研究团队关注的一类病毒来源重复序列——MLT2A1——并不是静静留在基因组里而已。
研究人员减少由MLT2A1序列产生的RNA后,胚胎发育受到影响,许多基因的激活程度也随之降低。RNA是以DNA信息为模板合成的分子,其中一些还能调控其他基因的活动。进一步分析发现,分散在基因组不同位置的MLT2A1序列会产生不同的RNA,这些RNA能够协同作用,增强早期胚胎中的基因表达。1
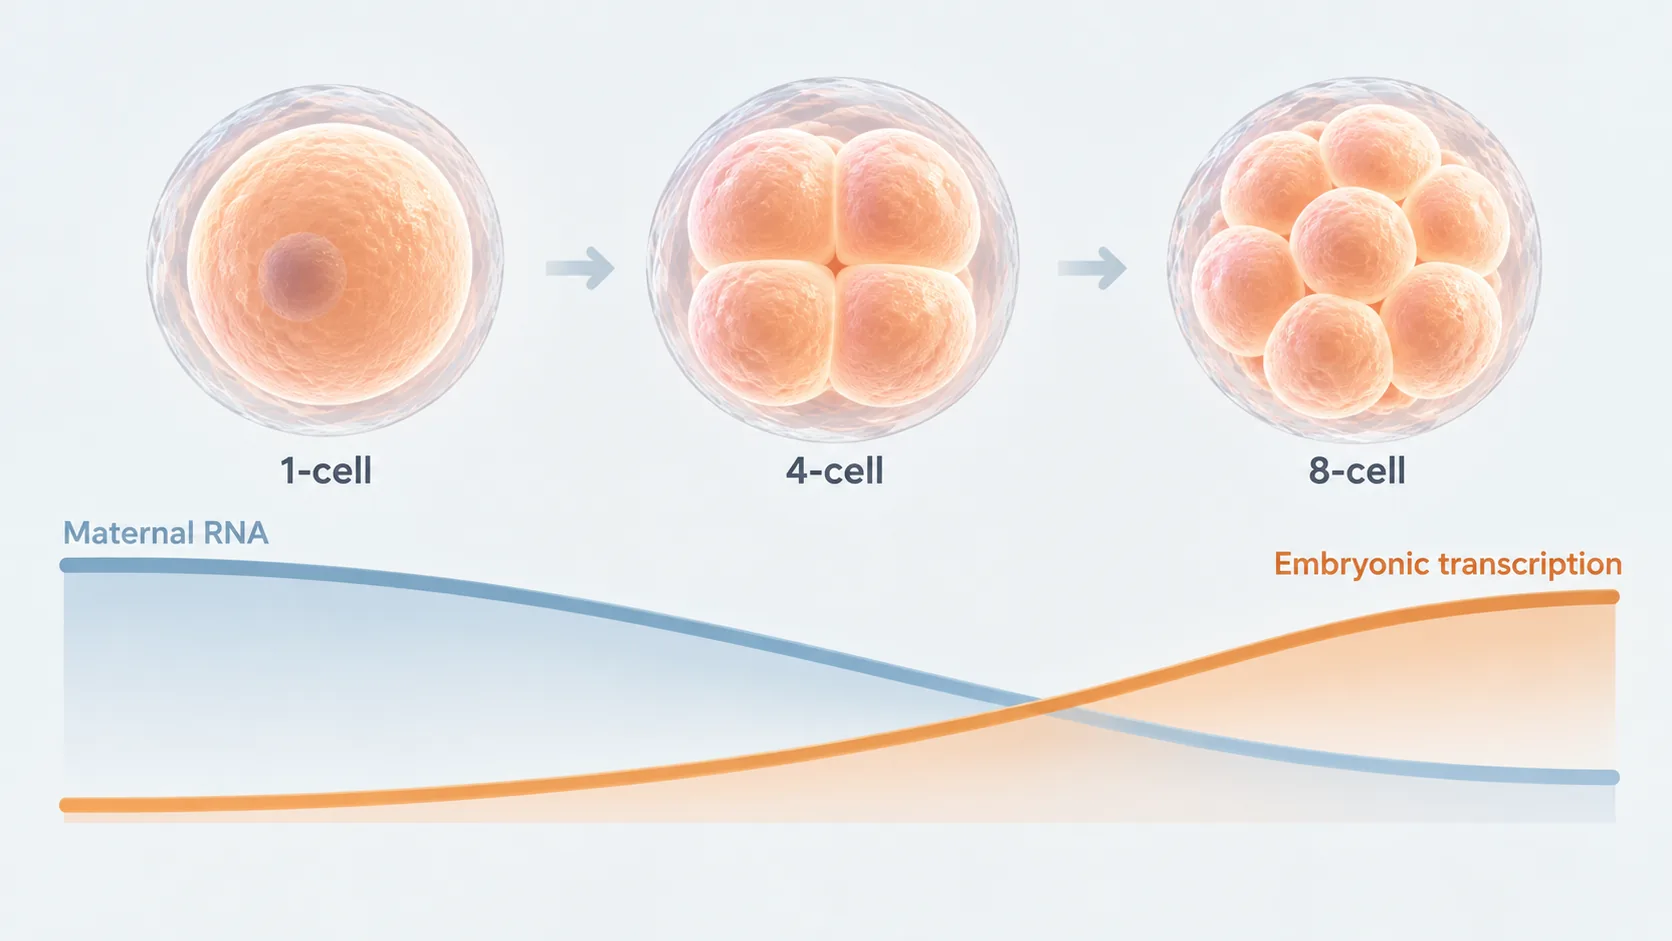
这一现象之所以重要,是因为受精后的胚胎会经历一次关键的转变。最初,胚胎在很大程度上依赖卵子预先提供的RNA和蛋白质。随后,胚胎逐渐增加对自身DNA的转录;在人类胚胎中,八细胞阶段前后会出现大规模的基因激活。这一过程称为合子基因组激活(ZGA)。2
曾经属于病毒的DNA序列,竟参与了人类胚胎启动自身基因组的过程。
留在基因组中的病毒痕迹
逆转录病毒会将自身遗传信息插入受感染细胞的DNA。如果这种插入发生在远古祖先的生殖细胞中,并传给后代,那么病毒来源的DNA也可能成为可遗传的基因组序列。
随着时间推移,这些序列不断积累突变。即使失去形成完整病毒的能力,相关DNA仍可能保留下来。这类可遗传的病毒来源序列称为内源性逆转录病毒(ERV)。
人类会利用病毒来源的遗传物质,并不是新发现。一个典型例子是胎盘中的合胞素(syncytin)。这种蛋白质源自逆转录病毒的包膜蛋白,参与胎盘细胞之间的融合。3
早期人类胚胎会表达病毒来源序列,也早已为研究者所知。不过,仅仅观察到某种序列在不同发育阶段的表达水平发生变化,并不足以证明它确实参与了发育过程。
因此,研究人员减少MLT2A1来源RNA的实验尤其重要。他们在研究用人类胚胎,以及能够部分重现人类八细胞期基因表达特征的培养细胞模型中,检测了MLT2A1的功能。减少相关RNA后,多个基因的激活程度下降;在所测试的条件下,胚胎发育也受到损害。14
所以,MLT2A1并不只是发育停滞时表达水平恰好下降的一个指标。实验结果支持它在早期胚胎基因组激活中具有功能性作用。
但这种作用并不能用单个基因的活动来解释。
分散的序列如何形成调控网络
MLT2A1家族的序列分布在基因组的多个位置。每处序列周围相邻的DNA并不相同。
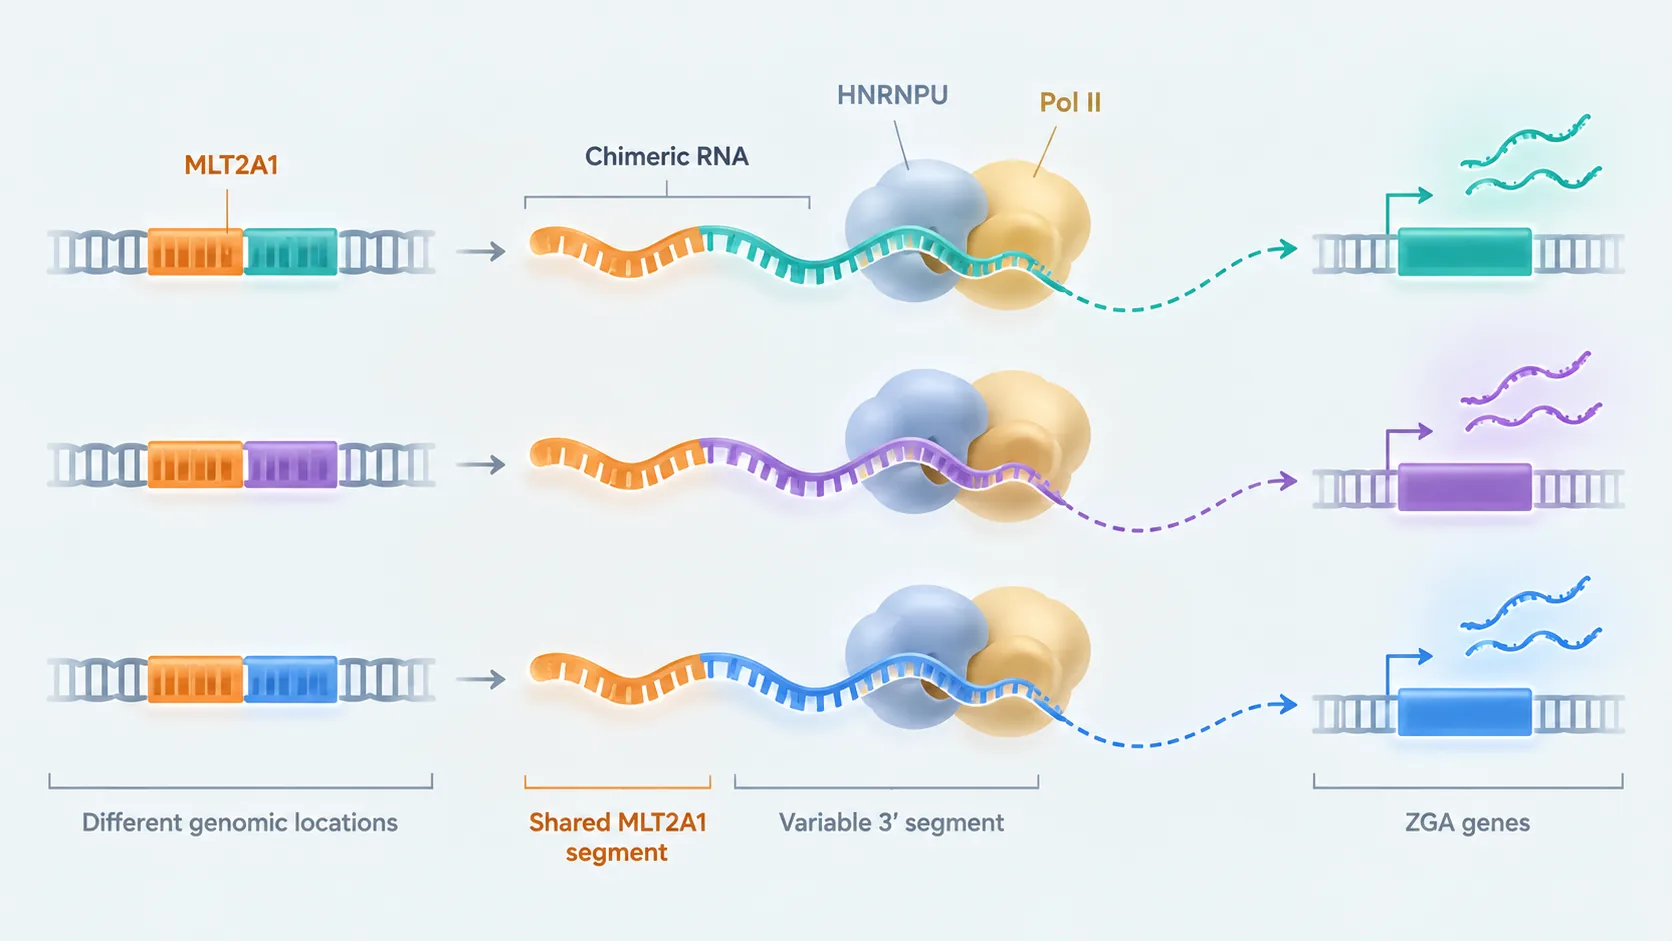
研究人员分析这些位置产生的RNA后发现,许多RNA并未在MLT2A1序列末端结束,而是继续延伸到后面的相邻序列。
于是形成了一类RNA:前段相似,后段却各不相同。由来自不同序列的片段连接而成的RNA,称为嵌合RNA。
研究还发现,这种结构差异关系到RNA如何发挥作用。各不相同的后段,使这些RNA能够作用于更广泛的基因组区域;共同的MLT2A1来源片段,则与一种RNA结合蛋白HNRNPU发生相互作用。HNRNPU参与招募RNA聚合酶II,后者是以DNA为模板合成RNA的酶。1
不同的后段扩大了网络的作用范围,共同的前段则有助于汇集基因转录所需的分子机制。
这些RNA不仅增强多个胚胎基因的表达,也促进MLT2A1家族自身的表达。来自基因组不同位置的RNA相互配合,支持范围更广的基因激活。
这正是研究的创新之处。它不只是说明某段古老病毒序列获得了新功能,而是揭示了分散在基因组各处的序列及其产生的RNA,如何相互联系并形成调控网络。
谁先启动,又在何时启动?
那么,MLT2A1的活动是怎样开始的?
2025年,Qiuyan Wang等研究人员在《Nature Genetics》报告,卵子传递给胚胎的一种转录因子——OTX2——参与调控人类胚胎早期基因组激活。转录因子是一类能够与DNA特定区域结合、调节基因表达的蛋白质。
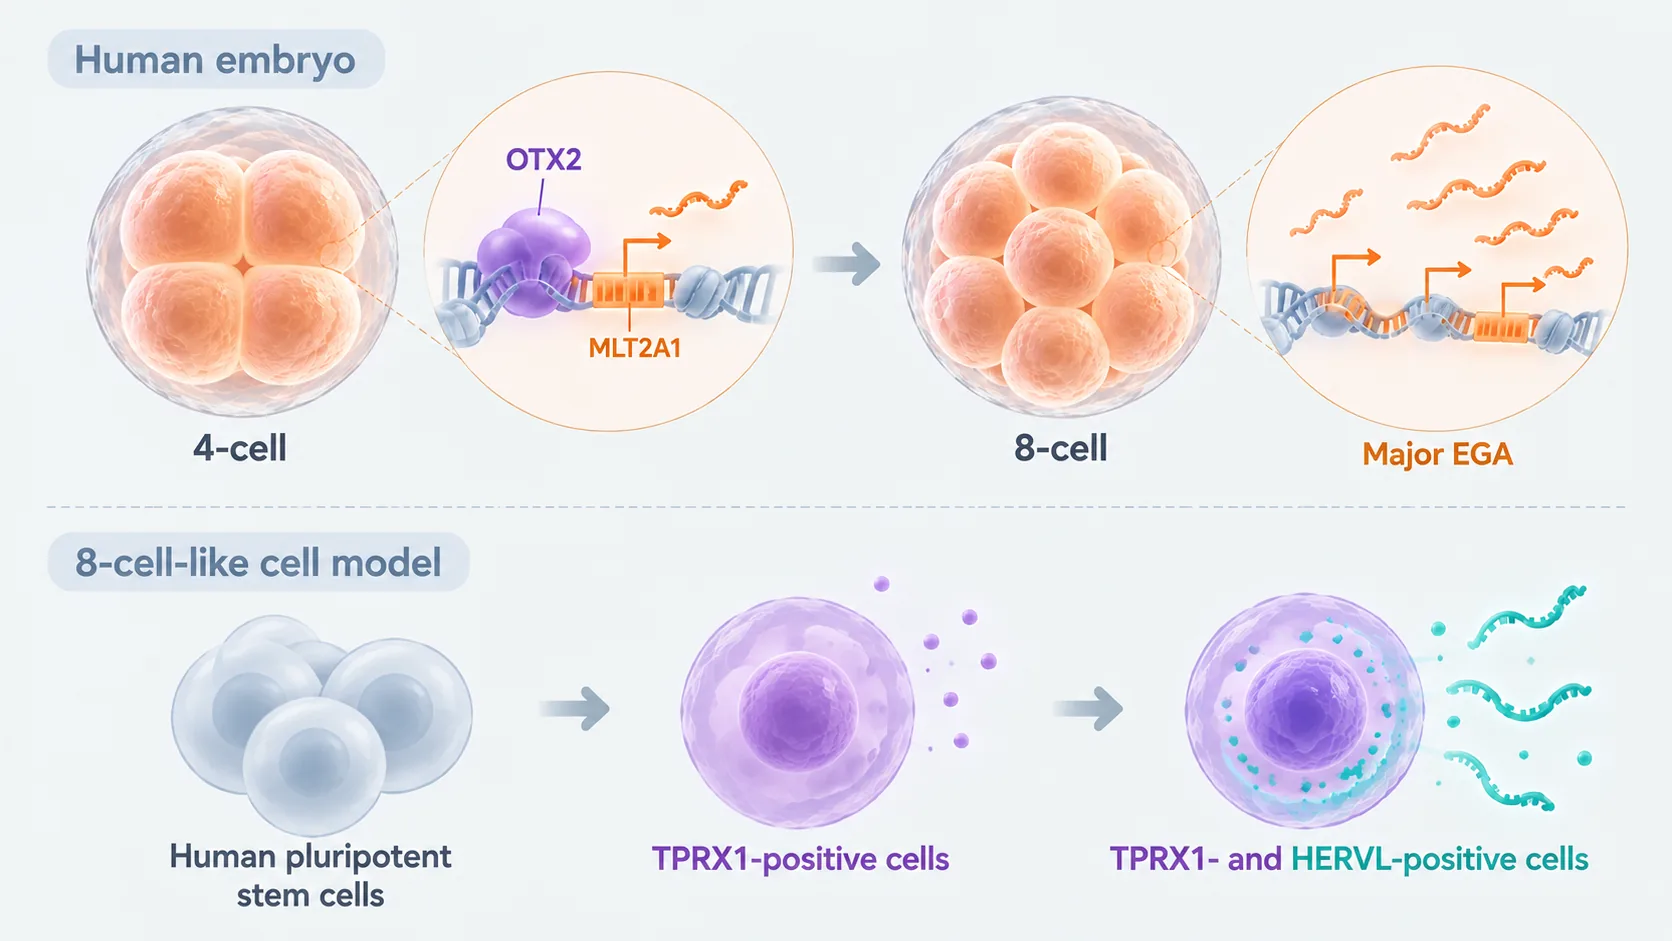
在人类胚胎的四细胞阶段,OTX2促进MLT2A1以及其他一些基因和重复序列的激活。因此,早期胚胎的基因表达并不是由MLT2A1单独启动的,而是与来自卵子的调控因子及其他调控机制相互配合。5
这又引出了一个问题:要理解胚胎发育,除了知道哪些因素参与基因激活,它们先后在什么时间发挥作用,是否同样重要?
2026年10月,An Huang等研究人员在《Cell Reports》发表了一项追踪相关激活顺序的研究。他们使用的并非真实人类胚胎,而是通过培养人类干细胞获得的八细胞期样细胞(8CLC)。这种模型能够重现早期胚胎的部分基因表达特征。
在这些细胞逐步进入八细胞期样状态的过程中,首先出现了基因表达调控因子TPRX1的表达。随后,又出现同时表达HERVL的细胞。HERVL是一类病毒来源的重复序列。抑制HERVL的活动,还会影响细胞向早期胚胎样状态转变的过程。6
这项研究并没有在真实人类胚胎中重新验证MLT2A1的作用机制。但它表明,在这一培养模型中,病毒来源序列的激活具有先后顺序,其活动也参与了细胞状态的变化。
与此同时,研究人员开发了更高效的八细胞期样细胞培养方法。借助这些模型,科学家能够在不反复操作真实人类胚胎的情况下,进一步研究早期基因激活的时间顺序和调控关系。7
发育停滞的胚胎究竟出了什么问题?
这些研究成果尚不能直接用于不孕症治疗,也没有立即解决体外受精中的临床难题。
在发育停滞的胚胎中观察到MLT2A1表达较低,与人为减少其RNA后发现发育受到影响,是两类不同的证据。发育停滞胚胎的数据包含前核状态不同的样本;部分干预实验还使用了具有**三个前核(3PN)**的研究用胚胎,它们不同于正常受精的胚胎。八细胞期样细胞中的实验结果,也不能直接证明真实胚胎是否具备继续发育的能力。4
即使胚胎在同一阶段停止发育,其内部发生的分子变化也未必相同。有些胚胎可能是启动基因表达的调控因子出了问题;另一些胚胎则可能是多种RNA协同作用的过程受到干扰。
这些差异是否真正导致发育停滞,目前仍不清楚。这项研究揭示的是MLT2A1来源RNA的功能,而不是按照病因对发育停滞胚胎进行分类的方法。
如今,我们多了一条分子层面的线索,可以进一步探究:相同的发育停滞结果,背后是否存在不同的原因。
继续阅读 CAUSIFOLD
在 Substack 关注 CAUSIFOLD 的新文章与动态。
在 Substack 订阅 ↗注释
1. 2026年核心研究。 Xiang, Y. et al., “Endogenous retroviruses synthesize heterologous chimeric RNAs to reinforce human early embryo development,” Science 391, eadv5257 (2026). DOI: 10.1126/science.adv5257。Yangquan Xiang是共同第一作者之一。研究人员观察到,停滞在八细胞阶段的人类胚胎中MLT2A1表达较低,并通过功能抑制实验与分子分析,提出由嵌合RNA、HNRNPU和RNA聚合酶II参与的转录调控网络。表达降低的观察结果与人为干预得到的结果属于不同类型的证据。MLT2A1属于与ERVL相关的**长末端重复序列(LTR)**家族。研究数据收录于NCBI BioProject PRJNA1116059及GEO GSE268270。
2. 合子基因组激活。 受精后不久,人类胚胎主要依赖卵子提供的RNA和蛋白质。此后,胚胎自身基因组的转录逐渐增强,在八细胞阶段前后出现显著的大规模激活。并非所有基因都在同一时刻开启。 Xiang et al., Science (2026)
3. 病毒来源遗传序列的早期研究。 Mi, S. et al., “Syncytin is a captive retroviral envelope protein involved in human placental morphogenesis,” Nature 403, 785–789 (2000). DOI: 10.1038/35001608。Göke, J. et al., “Dynamic transcription of distinct classes of endogenous retroviral elements marks specific populations of early human embryonic cells,” Cell Stem Cell 16, 135–141 (2015). DOI: 10.1016/j.stem.2015.01.005。早在2026年之前,科学家就已研究过生物体对病毒来源遗传物质的功能性利用,以及人类早期胚胎中重复序列随发育阶段变化的表达现象。但仅仅观察到表达,并不意味着已证明相关序列具有发育所必需的功能。
4. 研究伦理与实验体系的区别。 国际干细胞研究学会(ISSCR)的《干细胞研究与临床转化指南》提供了有关人类胚胎研究的捐赠知情同意和伦理监督的国际指导原则。2025年的更新也涉及干细胞来源胚胎模型的监督要求。8CLC等仅重现部分基因表达特征的细胞模型,不能等同于完整的人类胚胎。
Xiang等研究人员使用了真实人类胚胎和八细胞期样细胞。发育停滞胚胎的转录组数据集GEO GSE268186包含按2PN、3PN和0PN分类的样本。2PN表示观察到两个前核,3PN表示三个前核,0PN则表示在观察时未见前核;0PN本身不能证明没有发生受精。与正常2PN胚胎比较时,研究人员还重新处理了此前公开的转录组数据(SRP163205)。降低MLT2A1表达后的基因表达数据登记于GSE268184。在抑制HNRNPU的实验GSE301882中,研究人员向3PN研究用胚胎注入了siRNA。受精、培养和干预条件不同的实验结果,不能全部当作正常受精胚胎的发育结果来理解。有关8CLC的实验模型性质,可参见Taubenschmid-Stowers, J. et al., “8C-like cells capture the human zygotic genome activation program in vitro,” Cell Stem Cell 29, 449–459.e6 (2022), DOI: 10.1016/j.stem.2022.01.014。
5. 来自卵子的调控因子OTX2。 Wang, Q. et al., “Maternal factor OTX2 regulates human embryonic genome activation and early development,” Nature Genetics 57, 2772–2784 (2025). DOI: 10.1038/s41588-025-02350-8。Qiuyan Wang是共同第一作者。在人类胚胎的四细胞阶段,OTX2促进TPRX1、TPRX2及HERVL-int、MLT2A1的激活。共同抑制OTX2和TPRXL后,八细胞阶段的基因激活与染色质可及性缺陷更加明显。这些结果支持OTX2的调控功能,但并未证明TPRX1在人类真实胚胎中直接激活MLT2A1。
6. 八细胞期样细胞中的激活顺序。 Huang, A. et al., “Sequential TPRX1 and HERVL activation delineates a progression toward the totipotent-like state,” Cell Reports 45, 118163 (2026). DOI: 10.1016/j.celrep.2026.118163。An Huang等研究人员用不同的荧光信号区分TPRX1与HERVL的活动,并追踪细胞状态随时间的变化。CRISPR干扰及靶向RNA的实验支持HERVL序列及其来源RNA对这种状态转变具有功能性贡献。实验使用的是培养细胞模型,各个HERVL基因组位点的具体作用机制尚未厘清。
7. 更高效的细胞模型诱导方法。 Kong, X. et al., “Chemical reprogramming of human pluripotent stem cells into 8-cell-like states,” Cell Research (2026). DOI: 10.1038/s41422-026-01314-9。Xi Kong等研究人员采用七种化学物质和LIF组成的7CL条件,在约六天内诱导出八细胞期样细胞。报道的TPRX1阳性细胞比例约为51.5%,这不是人类胚胎的生成率,更不是正常发育的成功率。这项研究应被视为细胞模型制备与验证方法的进展。